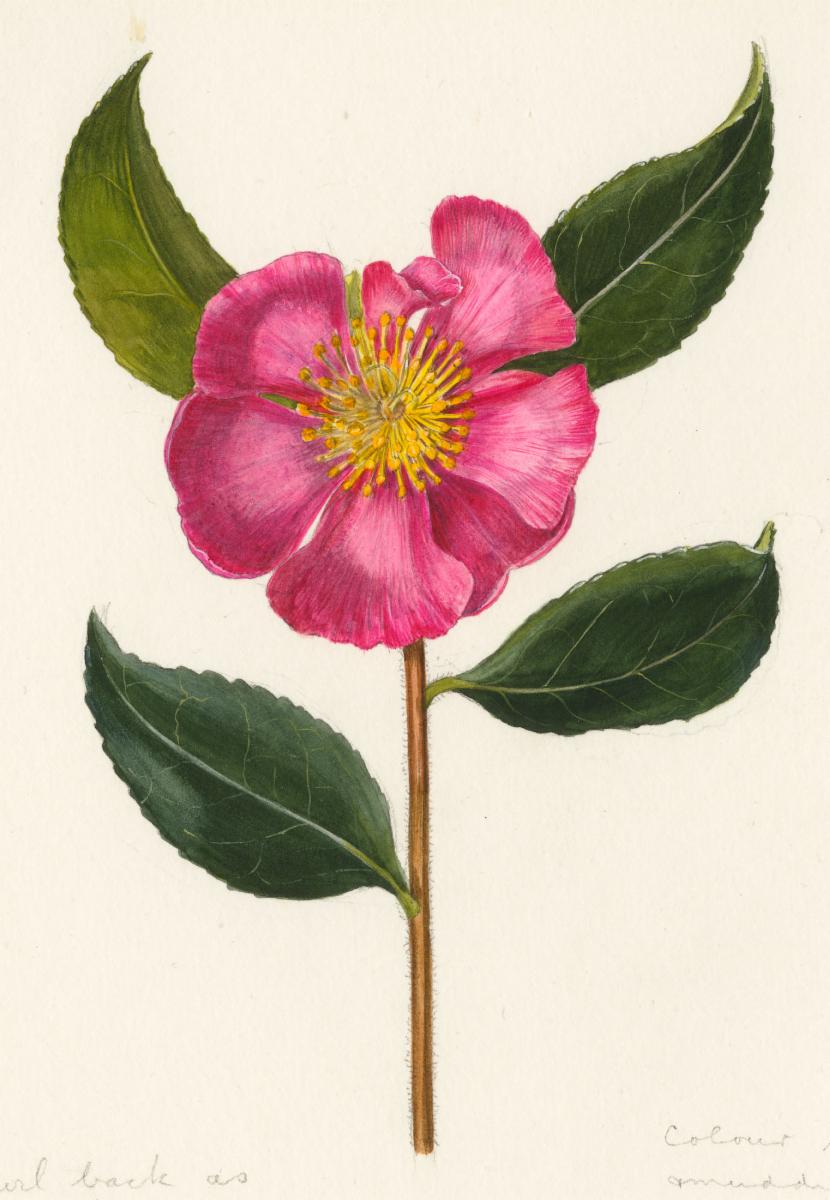


山茶属
 「茶花」重定向至此。关于其他用法,请见「山茶花」。
山茶属
| |
|---|---|

| |
| 本拼图展示了山茶属(Camellia)多个代表物种花部形态。 | |

| |
| 山茶木横切面 | |
科学分类 
| |
| 界: | 植物界 Plantae |
| 演化支: | 维管植物 Tracheophyta |
| 演化支: | 被子植物 Angiosperms |
| 演化支: | 真双子叶植物 Eudicots |
| 演化支: | 菊类植物 Asterids |
| 目: | 杜鹃花目 Ericales |
| 科: | 山茶科 Theaceae |
| 族: | 山茶族 Theeae |
| 属: | 山茶属 Camellia L., 1753 |
| 模式種 | |
| 山茶花 Camellia japonica L., 1753[1]
| |
| 多样性[2] | |
| 241种 (截至2026年8月1日) | |
| 異名[2] | |
| |
山茶属(学名:Camellia)是杜鹃花目山茶科的模式属。该属为常绿灌木或小乔木,分布于东亚至东南亚地区,以中国南部及西南部为现代分布中心;该属由林奈于1753年建立,拉丁属名源自旅居亚洲的摩拉维亚耶稣会士乔治·约瑟夫·卡梅尔(Georg Joseph Kamel)的姓氏[3][4]。
本属是山茶科中经济价值最大的类群,包括茶树(C. sinensis,茶叶来源)、山茶花(C. japonica,著名观赏花卉)、茶梅(C. sasanqua,观赏花卉及油料作物)和油茶(C. oleifera,油料作物)等重要物种[3][5]。
形态特征
[编辑]


灌木或乔木。叶多为革质,羽状脉,有锯齿,具柄,少数抱茎叶近无柄。花两性,顶生或腋生,单花或2-3朵并生,有短柄;苞片2-6片,或更多;萼片5-6,分离或基部连生,有时更多;苞片与萼片有时逐渐转变,组成苞被,从6片多至15片,脱落或宿存;花冠白色或红色,有时黄色,基部多少连合;花瓣5-12片,栽培种常为重瓣,覆瓦状排列;雄蕊多数,排成2-6轮,外轮花丝常于下半部连合成花丝管,并与花瓣基部合生;花药纵裂,背部着生,有时为基部着生;子房上位,3-5室,花柱5-3条或5-3裂;每室有胚珠数个。果为蒴果,5-3爿自上部裂开,少数从下部裂开,果爿木质或栓质;中轴存在,或因2室不育而无中轴;种子圆球形或半圆形,种皮角质,胚乳丰富[1]。
分布地
[编辑]分布于不丹、柬埔寨、中国、印度东北部、印度尼西亚、日本南部、韩国、老挝、马来西亚、缅甸、尼泊尔、菲律宾、泰国、越南;其中起源中心是中南半岛(越南、老挝、柬埔寨)、云南南部和广西南部的热带地区,现代分布中心则是中国长江以南的广大亚热带地区[6][7]。
文化历史
[编辑]山茶属植物在东亚和西方文化中具有不同的地位。在东亚,茶花与文学、医药、宗教和日常生活紧密关联;在西方,它长期被视为观赏植物和园艺研究对象[8]。
中国
[编辑]
山茶属植物的栽培史可追溯至1800年前的三国时期。张翊在所著《花经》中将山茶排列为“七品三命”[9]。南北朝时期,茶花以“海石榴”之名进入文学视野。江总(519-594年)《山庭春日诗》中“岸绿开河柳,池红照海榴”是已知最早提及茶花的诗作之一,以花期短暂隐喻生命易逝,这一主题在后世文学中反复出现[8]。
在唐代,茶花仍多以“海榴”称谓,见录于皇甫曾、李牧等人的诗作,至唐末五代才逐渐出现“山茶花”之名。南诏《南诏图传》(899年)中的两株滇山茶(Camellia reticulata)是山茶作为园林景观植物的早期图像证据。至宋代,“山茶(花)”称谓全面取代“海榴”,诗画中的品种记录显著增加。从101首宋代诗词中可梳理出“黄香”、“玉环”、“红百叶”、“并山茶”、“日丹”、“吐丝”、“玉馨”、“桃叶”、“玉茗”、“都胜”、“鹤顶红”、“月丹”等十余个品种,并在绘画(如李嵩《花篮图》、林椿《山茶雾雪图》)中留下可与文字互证的形象记录[10]。宋代诗人苏轼、曾巩、杨万里等留下了大量咏茶花作品,在描摹形态之外,赋予其“傲雪经霜”的人格化品格[11]。
明清时期是茶花品种与园林应用的鼎盛期。明代王象晋《群芳谱》记载28个品种,冯时可《滇中茶花记》载云南山茶“种类七十有二”;至清代朴静子、李祖望各自编撰《茶花谱》,所录品种增至40余个。此间还出现了一批流传至今的品种如“十八学士”、“醉杨妃”、“抓破脸”等。在园林应用上,茶花已广泛植于私家庭院与寺庙园林,并出现以茶花为主题的专类园雏形——如明末沐氏西园“簇锦楼”四面簇茶花数十株,清光绪年间拙政园主人张履谦建“十八曼陀罗花馆”专植名品。在植物配植上,茶花常与梅花、水仙、竹子组合,并发展出与玉兰、牡丹、柏树的配置,注重色彩对比与季相变化。栽培技术上出现嫁接、芽变选种等方法,盆栽与瓶供亦使观赏茶花不再限于室外空间[12]。

在文化品格上,明代邓渼总结山茶有“十德”(艳而不妖、寿二三百年、耐霜雪、瓶插十余日不变色等),冠以“十德花”之誉;清代段绮以“岂徒丹砂红,千古英雄血”将山茶与英雄气节关联。在精神寄托层面,明代杨慎被贬云南后写下“绿叶红英斗雪开,黄蜂粉蝶不曾来”,以山茶的孤傲自况;担当和尚“树头万朵齐吞火,残雪烧红半个天”则借晋宁盘龙寺古茶寄寓禅机。宗教对古茶树的保护作用显著:昆明地区206棵古茶树中28%保存在寺庙内,楚雄紫溪山的古茶树近半数分布于宗教遗址,彝族“密时”神坛以禁忌(禁攀折)的形式保护了当地约六分之一的古茶树[11][13]。
此外,彝族、白族、纳西族等少数民族将茶花视为“圣花”或“花王”,通过祭祀、禁忌和日常栽培,形成了古茶树保护的民间机制[13]。
日本
[编辑]
日本的山茶栽培受中国直接影响。公元7世纪初(唐代),遣唐使将浙江的山茶花从温州港带回日本,命名为“椿”(ツバキ,Tsubaki)。日本最早的记载见于《万叶集》(700-750年),其中咏山茶的和歌共10首,除“椿”外亦使用“海石榴”。据考证,“椿”为日本造字,意指春天开花的树木;而“海石榴”一词很可能从中国传入[9]。
日本茶花文化在江户时代(1603-1867)达到高峰。16世纪丰臣秀吉从中国、高丽大量引种,培育出重瓣及斑纹品种。《武家秘传录》等文献记录了德川幕府在江户城内栽培茶花,至17世纪已有200多个品种。与中国不同,在日本C. japonica被称为“椿”,而原产日本的茶梅(C. sasanqua)则被称为“山茶花”(サザンカ,Sazanka)——这一名称互换关系曾造成学术交流中的混淆。欧洲学者即因日本对茶梅的读音而将其学名定为sasanqua[9]。在文化符号层面,山茶花在德川幕府时期曾被用作基督教徒的秘密象征:由于公开崇拜被禁,信徒将花瓣脱落后残留的雌蕊群视为十字架的隐喻,并视茶树的“重生”为信仰复苏的象征[14]。
西方
[编辑]

山茶花(C. japonica)首次抵达欧洲的确切记录为1620年,种子由荷兰商人引入葡萄牙[14]。在此后近两百年间,活体标本极为稀少,欧洲人对茶花的认知主要依赖少量腊叶标本、从中国进口的茶叶和瓷器、壁纸上的图案,以及探险家的文字描述。德国医生安德烈亚斯·克莱耶(Andreas Cleyer)1682-1687年间随贸易使团访日,其信件中附有“Tsumacky”版画,是欧洲最早的茶花图像之一;1712年,受雇于荷兰东印度公司的医生恩格尔贝特·肯普弗(Engelbert Kaempfer)出版《异域采风录》(Amoenitatum Exoticarum),以“Tsubakki”之名描述了山茶花、茶梅和茶树,书中插图因日语汉字“椿”缺少一笔而造成学名混乱近百年[8]。
英国是茶花西传的重要枢纽。1739年前,贵族Petre勋爵在埃塞克斯郡的温室中培育了欧洲第一株山茶花植株[14];1745年乔治·爱德华兹(George Edwards)《鸟类自然史》中的山茶花彩色插图是西方首次对该植物的图像记录[8];1792年,东印度公司船只“Carnatic”号将第一批有命名的品种('Alba Plena'、'Variegata')带入英国。1820年,理查德·劳斯船长(Richard Rawes)从广州将第一株滇山茶(C. reticulata 'Captain Rawes')引入英国,此后由罗伯特·福琼(Robert Fortune)等人扩大引种。1819年,塞缪尔·柯蒂斯(Samuel Curtis)出版《山茶属专论》(A Monograph on the Genus Camellia),书中克拉拉·玛丽亚·波普(Clara Maria Pope)绘制的五幅版画成为该书的艺术代表[14][8]。
| 外部圖片链接 | |
|---|---|
 Stella Ross-Craig《柯蒂斯植物学杂志》茶梅(1939),出自此处,2026-08-04访问 |
此外,油茶(C. oleifera)在1811至1823年间由英国东印度公司船长从中国引入欧洲,而真正的茶梅(C. sasanqua)直到1896年才被引入欧洲[15]。

但在西班牙,茶花的历史可追溯至更早的时期。虽然首批活体植株的确切抵达时间缺乏文献记载,但历史与文化证据表明,16–17世纪西班牙和葡萄牙的航海者、传教士已可能将茶花引入伊比利亚半岛。葡萄牙航海者自1516年探索中国、1543年抵达日本,建立了东方航线;西班牙则通过“马尼拉大帆船”航线(1565–1821年)连接东方与欧洲。传教士在亚洲的传教活动同样可能是引入途径,例如1549年方济各·沙勿略在日本九州开始传教,后人推测其携带的植物中可能包含茶花;葡萄牙探险家费尔南·门德斯·平托(Fernão Mendes Pinto)于1558年在日本建立首座基督教堂后带回葡萄牙的植物亦可能包含茶花。在1753年林奈正式命名Camellia之前,这些植物通常被称为“中国玫瑰”或沿用当地名称(Tcha、Tsubaki等),因而难在文字记载中辨识[16]。
加利西亚是西班牙山茶花栽培的核心地区。其酸性土壤、湿润温和的气候为山茶提供了理想生长条件,部分植株甚至比原产地长得更大。19世纪中叶,葡萄牙波尔图的若泽·马克斯·洛雷罗(José Marques Loureiro)苗圃向加利西亚的拉卡埃拉农业学校(Escuela de la Caeira, 1872–1886年)大量供应山茶花品种,后者成为茶花在加利西亚扩散的关键节点。1882年该校目录列出139个品种,其中包含绿茶植株。现存古树分布于多处历史花园,如圣克鲁斯-德-里瓦杜拉庄园(Pazo de Santa Cruz de Rivadulla)的单瓣古山茶花植株,奥卡庄园(Pazo de Oca)的C. reticulata 'Capitan Rawes',基尼昂内斯·德·莱昂庄园(Pazo de Quiñones de León,位于维戈)的“玛土撒拉”古树等;其中部分已纳入《加利西亚珍稀树木名录》(Decreto 67/2007)予以保护[16]。位于蓬特韦德拉省的蒙达里斯-瓦尔内亚里奥(Mondariz-Balneario)小镇以温泉闻名,其大酒店(Gran Hotel)花园在历经火灾和衰败后于21世纪初启动修复,保留了19世纪末的历史布局。花园内不仅保存有高达30米的日本柳杉(Cryptomeria japonica)等古树,还专门规划了六个茶花种植区,按品种和花色分组栽植山茶花、茶梅、威廉山茶及肥后山茶等类群,并设计短途(30分钟)和长途(1小时)两条参观路线。该修复项目旨在将历史遗产与自然景观结合,未来计划纳入“加利西亚山茶花之路”旅游线路[17]。
1850年,茶花从贵族温室走向露地庭园。意大利是欧洲品种培育的重要中心,诞生了阿博特·洛伦佐·贝莱塞(Abbot Lorenzo Berlese)及其《山茶属专论》等著作,2023年意大利已登录2,852个品种(欧洲之首)[18][19]。在比利时,亚历山大·费尔斯哈费尔特(Alexandre Verschaffelt)出版《新山茶图志》(Nouvelle Iconographie des Camellias,1848-1860),共收录623个品种的手绘彩图,成为19世纪茶花命名的重要依据[14]。茶花传入北美始于1798年的新泽西州,至20世纪初加利福尼亚州成为美国茶花育种中心,品种数量跃居全球首位[20]。
截至2019年,全球有效茶花品种达23,887个,其中美国贡献7,502个,日本6,592个,意大利2,833个,中国2,066个,澳大利亚1,216个。在物种组成上,山茶花(C. japonica)及其杂交种占观赏品种的74.1%,滇山茶(C. reticulata)占5.85%,茶梅(C. sasanqua)占5.27%[20]。
分类与演化
[编辑]山茶属的分类与演化研究历经逾两百年,至今仍是植物系统学中争议较大的领域之一。该属的现代分类学可追溯至林奈的奠基工作,其将山茶花命名为Camellia japonica,并将中国舟山群岛的栽培茶树命名为Thea sinensis[21]。
直至1815年,Robert Sweet将Thea归并于Camellia,山茶属作为正式且唯一的属名沿用至今。随后,Dyer对该属进行了组的划分,将14个物种划分为茶组(sect. Thea)和红山茶组(sect. Camellia)。Pierre随后增加了实果茶组(sect. Stereocarpus)、匹克茶组(sect. Piquetia,即越南茶组)、管蕊茶组(sect. Calpandria)和毛蕊茶组(sect. Camelliopsis)[21]。
1859年,Berthold Seemann在《伦敦林奈学会会刊》上发表了对两属的全面修订。Seemann通过对大量标本的细致解剖,提出了几项此前被忽视的区分特征:内轮离生雄蕊的数目(山茶属为花瓣数的2倍,茶属则与花瓣数相等)、花柱数(前者多为5枚,后者固定为3枚)以及花的状态(前者花直立无梗,后者花下垂有梗)。基于这些标准,他将当时已知的大部分山茶属物种保留于山茶属(如山茶花、茶梅、油茶),将茶树及少数几个物种归入茶属[22];林奈将茶与山茶分属不同属的观点一度流行,但至1911年,植物学家已普遍同意两属亲缘过近而应合并,不过当时认为Thea为更早的合法属名[4]。
1935年,于阿姆斯特丹举行的第六届国际植物学大会(International Botanical Congress)决定,基于植物命名方面的考虑,《植物种志》的第一卷和第二卷被认为是同时发表的,Thea相对于Camellia不再具有优先权。由于最早(Robert Sweet于1818年)做出将二属合并的分类学处理时选用的属名是Camellia,这一处理被沿用至今,茶属(Thea)中的所有学名都被组合到山茶属(Camellia)名下[23]。
20世纪初,Cohen Stuart发表包含38个物种的山茶属系统大纲,建立了连蕊茶组(sect. Theopsis)并更新了毛蕊茶组(sect. Eriandria)。1958年,Joseph Robert Sealy首次对山茶属进行全面修订,新增了短柱茶组(sect. Paracamellia)、异形茶组(sect. Heterogenea)、半宿萼茶组(sect. Pseudocamellia)、离蕊茶组(sect. Corallina)和古茶组(sect. Archecamellia),将山茶属分为12个组,认定82个物种,并附带了系统位置未定和存疑的23个名称,初步讨论了该属的演化关系[21][24]。
在中国,张宏达基于“苞萼不分化”为原始性状的观点,将山茶属划分为4个亚属——原始山茶亚属、山茶亚属、茶亚属、后生山茶亚属(subg. Protocamellia、subg. Camellia、subg. Thea、subg. Metacamellia),22个组,约280个物种。与之相对,闵天禄认为“苞萼不分化”是次生性状,提出将山茶属分为2个亚属——茶亚属(subg. Thea)和山茶亚属(subg. Camellia),合并为14个组,约119个种。2007年出版的《中国植物志》记载中国山茶属植物11组97种,世界山茶属植物包含14组约120种[21][1]。
在形态演化方面,闵天禄与张文驹提出:山茶属的演化趋势包括从具花梗到无花梗、从小苞片宿存到脱落、从心皮离生到合生等,认为匹克茶组(sect. Piquetia)是最原始的类群,而连蕊茶组(sect. Theopsis)和管蕊茶组(sect. Calpandria)是最进化的类群[7]。与之相反,叶创兴与张宏达则提出花无梗、苞萼不分化才是原始特征,而有花梗、苞萼分化是次生性状,并指出山茶属的系统发育存在阶段性与个体发育不同步的现象[25]。
分子系统学研究中,利用核糖体ITS序列的研究将山茶属划分为八个主要支系,并支持茶组(sect. Thea)和糙果茶组(sect. Furfuracea)为单系类群[26],但ITS序列在山茶属中协同进化不完全,限制了其可靠性。基于RPB2内含子和waxy基因序列对全球99个分类单元的分析,识别出10个具分类学意义的支系,该研究估测山茶属冠群年龄约为39.5百万年,并强调全面的分类单元采样比增加DNA数据长度更为重要[27]。
采用大规模低拷贝核基因的谱系转录组学分析进一步深化了对山茶属系统发育的理解。基于610个低拷贝核基因(总长858,606 bp)对山茶科全科的系统发育分析显示,山茶属与大头茶属(Polyspora)互为姐妹群,二者共同与Apterosperma–Laplacea分支及核果茶属(Pyrenaria)构成山茶族(Theaeae)。该研究利用PhyloNet网络分析检测到山茶属内部存在两次杂交/基因渐渗事件。作者推测第四纪冰期海平面下降导致海南岛与越南等邻近陆地间出现陆桥,为两者间的基因交流提供了可能。在全基因组复制方面,该研究明确山茶属并未发生属特有的全基因组复制事件,而是与山茶科其他属及外类群共享两次古老的全基因组复制——At-γ(约Ks=1.5)和Ad-β(约Ks=0.36),后者此前在茶树基因组中被误命名为“Cm-α”或“山茶属四倍化事件”,实为广义杜鹃花目(Ericales)多个类群共享的古老事件[28]。
另一项基于1481个低拷贝核基因的转录组分析将87种山茶划分为8个主要支系,检测到广泛基因树冲突,网状演化分析显示三大组间存在基因流,估测冠群年龄约25.2百万年,主要支系在23至19百万年间快速辐射分化[29]。利用Angiosperm353探针捕获348个核基因的分析确认了族间和属间关系,但发现基因树估算误差(77%)和不完全谱系分选(22%)是基因树冲突的主因,并确认管蕊茶组(含C. lanceolata)为山茶属的基部类群[30]。
叶绿体基因组研究方面,对21个红山茶组物种的比较分析发现基因组结构高度保守,鉴定出rps16、psaJ、rpl33、rps8、rpl16五个高变区及atpH-atpI、petD-rpoA两个间隔区可作为潜在分子标记[31];对9个样品的分析则揭示rpsbK、psbM、ndhJ、ndhF、ndhD五个高变区可作为DNA条形码候选[32]。在群体层面,涵盖1325份茶组种质的全基因组重测序研究构建了茶树遗传变异图谱,揭示中国西南地区为茶树起源和驯化中心,古茶树处于野生近缘种与现代栽培品种之间的过渡位置,并发现C. sinensis var. pubilimba(多毛茶)在遗传上不构成独立分支[33]。
在油用类群方面,综合叶绿体基因组、1033个单拷贝核基因转录本和全基因组重测序数据,对13种油茶类群进行了系统发育重建,揭示核基因与叶绿体基因树间存在显著冲突,暗示网状进化历史。基因流分析(SNaQ和ABBA-BABA)检测到多个渗入事件,例如四倍体小果油茶(C. meiocarpa)与二倍体落瓣油茶(C. kissi)向六倍体普通油茶(C. oleifera)的基因流,据此推测普通油茶可能起源于落瓣油茶(母本)与小果油茶(父本)的杂交;小果短柱茶(C. confusa)可能源于落瓣油茶与短柱茶(C. brevistyla)的杂交;茶梅(C. sasanqua)则以短柱茶为母本之一。此外,花青素组成与系统发育分支高度吻合,支持代谢表型作为辅助分类标记的可行性[34]。
参考文献
[编辑]- ^ 1.0 1.1 1.2 张宏达. 山茶属 Camellia L.. 中国植物志 (PDF). 第49卷第3分册. 北京: 科学出版社. 1998: 3-6.
- ^ 2.0 2.1 Camellia L.. Plants of the World Online. Kew Science. [2026-08-01]. (原始内容存档于2023-02-03).
- ^ 3.0 3.1 杨世雄. 山茶属
 . 中国大百科全书. 第三版网络版. 北京: 中国大百科全书出版社. 2023-06-07 [2026-06-16].
- ^ 4.0 4.1 Camellia. Encyclopædia Britannica 5 (第11版). London: 101. 1911.
- ^ Camellia. Encyclopædia Britannica. Encyclopædia Britannica, Inc. [2026-06-16]. (原始内容存档于2026-06-19).
- ^ Min TL, Bartholomew B. Camellia. Flora of China 12. Beijing: Science Press. 2007: 366–367 [2026-08-03]. (原始内容存档于2025-12-30).
- ^ 7.0 7.1 闵天禄; 张文驹. 山茶属植物的进化与分布. 云南植物研究. 1996, 18 (1): 1–13.
- ^ 8.0 8.1 8.2 8.3 8.4 Menzies NK. Representations of the Camellia in China and during its early career in the West. Curtis's Botanical Magazine. 2017, 34 (4): 452–474. doi:10.1111/curt.12213.
- ^ 9.0 9.1 9.2 吴雅文; 张宁; 白天; 王艳梅; 刘震. 中日两国山茶花的渊源及异同. 世界林业研究. 2015, 28 (4): 81–84. doi:10.13348/j.cnki.sjlyyj.2015.0018.y.
- ^ 贾虎; 吴瑾; 张亚利. 唐宋诗画中的茶花及其园林应用初探. 园林. 2021, 38 (4): 08–13. doi:10.12193/j.laing.2021.04.0008.002
 .
- ^ 11.0 11.1 杨开达. 云南山茶文化论. 云南师范大学学报(哲学社会科学版). 2000, 32 (5): 22–26. doi:10.3969/j.issn.1000-5110.2000.05.007.
- ^ 贾虎; 董青云; 吴瑾; 沈琳; 李秉玲; 张亚利. 明清古籍及诗画中的茶花及其园林应用分析. 园林. 2024, 41 (4): 131–136. doi:10.12193/j.laing.2024.04.0131.016 .
- ^ 13.0 13.1 Xin T, de Riek J, Guo HJ, Jarvis D, Ma LJ, Long CL. Impact of traditional culture on Camellia reticulata in Yunnan, China. Journal of Ethnobiology and Ethnomedicine. 2015, 11: 74. doi:10.1186/s13002-015-0059-6 .
- ^ 14.0 14.1 14.2 14.3 14.4 Trehane J. History. Camellias: The Gardener's Encyclopedia. Portland: Timber Press. 2007: 15–30. ISBN 978-0-88192-848-8.
- ^ Camellia sasanqua . Trees and Shrubs Online. [2026-08-03].
- ^ 16.0 16.1 Vela P, Salinero C, Sainz MJ. Historia de la camelia en la jardinería gallega. Ramil-Rego P, Gómez-Orellana L (编). Xardinería e Paisaxismo en Galicia: Recursos e novos enfoques. Monografías do IBADER – Serie Biodiversidade. Lugo: Instituto de Biodiversidade Agraria e Desenvolvemento Rural (IBADER), Universidade de Santiago de Compostela. 2019: 89–106. ISSN 1988-8341.

- ^ Vela P, Salinero C, Verea V, Bernadrez G, Garcés U. Wang ZL , 编. The historical garden of Mondariz-Balneario (PDF). Proceedings of the International Camellia Congress, Lake Maggiore, Italy: 14–24. 2023 [2026-08-03]. (原始内容存档 (PDF)于2024-07-17) –通过Mondariz-Balneario official website.
- ^ Corneo A. Wang ZL , 编. Camellia History in Italy (PDF). Proceedings of the International Camellia Congress, Lake Maggiore, Italy: 1. 2023 [2026-08-03]. (原始内容存档 (PDF)于2024-07-17) –通过Mondariz-Balneario official website (Preview shows only the first page).
- ^ Motta G. Wang ZL , 编. Preface (PDF). Proceedings of the International Camellia Congress, Lake Maggiore, Italy. i. 2023 [2026-08-03]. (原始内容存档 (PDF)于2024-07-17) –通过Mondariz-Balneario official website.
- ^ 20.0 20.1 Wang YN, Zhuang HF, Shen YG, Wang YH, Wang ZL. The Dataset of Camellia Cultivars Names in the World. Biodiversity Data Journal. 2021, 9: e61646. doi:10.3897/BDJ.9.e61646 .
- ^ 21.0 21.1 21.2 21.3 邝雪琨; 郑倩; 孔庆博; 周佳思; 周莉君; 冯士令; 丁春邦; 陈涛. 山茶属植物系统发育及分类研究进展. 园艺学报. 2024, 51 (1): 53–66 [2026-08-03]. doi:10.16420/j.issn.0513-353x.2023-0192. (原始内容存档于2025-10-10).
- ^ Seemann B. XXV. Synopsis of the Genera Camellia and Thea. Transactions of the Linnean Society of London. 1859, 22 (4): 337–352 [2026-08-03]. doi:10.1111/j.1096-3642.1856.tb00103.x. (原始内容存档于2025-10-03).
- ^ 杨世雄. 茶组植物的分类历史与思考 [Thinking on the Taxonomy of Camellia sect. Thea]. 茶叶科学. 2021, 41 (4): 439–453 [2026-08-03]. doi:10.13305/j.cnki.jts.2021.04.001. (原始内容存档于2025-09-29).
- ^ 闵天禄; 顾志建; 张文驹; 谢立山. 世界山茶属植物的系统分类和植物地理学综合研究 (科技成果). 中国科学院昆明植物研究所. 2004.

- ^ 叶创兴; 张宏达. 山茶科系统发育诠释IX. 山茶属的原始特征及其演化趋向. 中山大学学报(自然科学版). 1997, 36 (3): 77–82.
- ^ Vijayan K, Zhang WJ, Tsou CH. Molecular taxonomy of Camellia (Theaceae) inferred from nrITS sequences. American Journal of Botany. 2009, 96 (7): 1348–1360. doi:10.3732/ajb.0800205 .
- ^ Zhao DW, Hodkinson TR, Parnell J. Phylogenetics of global Camellia (Theaceae) based on three nuclear regions and its implications for systematics and evolutionary history. Journal of Systematics and Evolution. 2022, 61 (2): 356–368. doi:10.1111/jse.12837.
- ^ Zhang X, Liu YZ, Li HT, Yang JB, Li DZ, Yu XQ, Peng H. Phylotranscriptomics and whole-genome duplication of the tea family (Theaceae). Annals of Botany. 2022, 129 (4): 457–471. doi:10.1093/aob/mcac007 .
- ^ Zan T, He YT, Zhang M, Yonezawa T, Ma H, Zhao QM, Kuo WY, Zhang WJ, Huang CH. Phylogenomic analyses of Camellia support reticulate evolution among major clades. Molecular Phylogenetics and Evolution. 2023, 182: 107744. doi:10.1016/j.ympev.2023.107744.
- ^ Yan YJ, da Fonseca RR, Rahbek C, Borregaard MK, Davis CC. A new nuclear phylogeny of the tea family (Theaceae) unravels rapid radiations in genus Camellia. Molecular Phylogenetics and Evolution. 2024, 196: 108089. doi:10.1016/j.ympev.2024.108089.
- ^ Xiao X, Chen JY, Ran ZH, Huang L, Li Z. Comparative analysis of complete chloroplast genomes and phylogenetic relationships of 21 sect. Camellia (Camellia L.) plants. Genes. 2025, 16 (1): 49. doi:10.3390/genes16010049 .
- ^ Cai YF, Tian M, Yang YJ, Shi ZM, Zhao PF, Wang JH. Nine complete chloroplast genomes of the Camellia genus provide insights into evolutionary relationships and species differentiation. Scientific Reports. 2025, 15: 8783. doi:10.1038/s41598-025-87764-4 .
- ^ Kong WL, Kong XR, Xia ZQ, Li XF, Wang F, Shan RY, Chen ZH, You XM, Zhao YY, Hu YP, Zheng SQ, Zhong ST, Zhang SC, Zhang YB, Fang KX, Wang YH, Liu H, Zhang YZ, Li XL, Wu HL, Chen GB, Zhang XT, Chen CS. Genomic analysis of 1,325 Camellia accessions sheds light on agronomic and metabolic traits for tea plant improvement. Nature Genetics. 2025, 57: 997–1007. doi:10.1038/s41588-025-02135-z .
- ^ Fan ML, Song ZX, Zhang Y, Li XL, Sun ZY. Multi-Approach Unveils Potential Gene Introgression of Oil Camellias. Horticulturae. 2024, 10 (12): 1252. doi:10.3390/horticulturae10121252 .


延伸阅读
[编辑]- Zhu XL, Jiang HD, Pan XF, Fu JX, Peng LH, Zhang J, Tang JM, Zou R, Zhao B, Wei X, Chai SF. Dynamic metabolomic and transcriptomic profiling reveals yellow flower development in Camellia perpetua, a rare continuously flowering golden Camellia species. Horticulture Advances. 2024, 2 (1): 29. doi:10.1007/s44281-024-00052-5 .
- 高继银; Clifford R. Parks; 杜跃强. 山茶属植物主要原种彩色图集 Collected Species of The Genus Camellia – An Illustrated Outline. 杭州: 浙江科学技术出版社. 2005. ISBN 7534125944.
- Wei S, Zhang Q, Tang S, Liao W. Genetic and ecophysiological evidence that hybridization facilitated lineage diversification in yellow Camellia (Theaceae) species: a case study of natural hybridization between C. micrantha and C. flavida. BMC Plant Biology. 2023, 23 (1): 154. doi:10.1186/s12870-023-04164-4 .
[在维基数据编辑]
 《欽定古今圖書集成·博物彙編·草木典·山茶部》,出自陈梦雷《古今圖書集成》
- 《植物名實圖考·山茶》,出自吳其濬《植物名實圖考》